 2025, Vol. 45


2. 海军军医大学东方肝胆外科医院医学工程科,上海 200433;
3. 中国人民解放军海军特色医学中心海洋生物医药与极地医学研究室,上海 200433
2. Department of Medical Engineering, Eastern Hepatobiliary Surgery Hospital, Naval Medical University, Shanghai 200433, China;
3. Department of Marine Biomedicine and Polar Medicine, Naval Medical Center of PLA, Shanghai 200433, China
电离辐射普遍存在于宇宙和地球中,是日常生活不可避免的一部分,比如医学诊疗、核能发电以及军工方面的核应用等等[1]。电离辐射的剂量决定辐射暴露的生物学效应,由于电离辐射能破坏DNA分子,所以电离辐射被归属为致癌物[2]。流行病学研究表明生物体在受到100 mGy以上的电离辐射,癌症风险呈剂量依赖性增加[3]。研究表明,一个人每年平均受到各种来源的电离辐射强度为2.4 mSv,主要来源为天然本底照射和医疗照射[4]。根据1991年联合国原子辐射效应科学委员会定义,低剂量电离辐射(low dose ionizing radiation, LDIR)为剂量低于200 mGy或剂量率低于0.1 mGy/min(1 h以内或1 h以上的平均剂量率)的外照射[5]。
睾丸是雄性的主要性腺器官,负责产生精子和分泌雄性激素,是对电离辐射最为敏感的组织之一,即使非常低剂量的辐射也会严重损害睾丸功能,为精子发生带来不利影响[6]。在生物体内,精子发生是一个复杂的动态过程,主要包括3个不同的阶段:①精原细胞增殖。②精母细胞减数分裂成精子细胞。③圆形精子细胞变形为精子,这整个过程受到外界环境和各种激素的共同调节[7]。精子发生在啮齿动物中需要历经35~40 d,在人类中需要64~74 d[8]。长期电离辐射会对精子发生产生影响,出现精子活力下降、精子形态异常、少精症乃至无精症[9]。迄今为止,LDIR对精子发生等生理过程的影响仍不清楚,对其潜在分子机制的研究一直是社会关注的热点问题[10]。同时,基于当前辐射防护损伤多以血液系统和胃肠消化系统为主,靶向生殖系统的损伤防护重视不足,尚未找到高效防治LDIR致精子发生损伤的措施。本文将主要综述LDIR对精子发生的损伤机制及其防护措施,为后续深层次的研究提供参考和借鉴。
一、LDIR引起精子发生损伤的机制1.氧化应激:在低剂量电离辐射条件下,水分子经辐射分解产生活性氧(reactive oxygen species, ROS),这一过程涉及自由基的生成,如羟基自由基(·OH),它们能够攻击DNA分子,造成DNA链断裂和碱基修饰等氧化损伤[11]。同时,线粒体电子传递链在正常代谢过程中也会生成ROS,特别是在复合体Ⅰ和复合体Ⅱ中,这些ROS可以逸出并损伤邻近的线粒体DNA,从而影响细胞功能和遗传稳定性[12]。细胞内ROS稳态受抗氧化防御系统的调节,当ROS产生与清除处于平衡状态时,细胞代谢稳定和信号传导正常。当ROS产生超过抗氧化防御系统的能力时,就可能会导致氧化应激,造成生精细胞的损伤。在畸形精子症中观察到精液中高水平的ROS水平是导致精子异常、生育力下降的主要原因,进一步支持其作为低剂量照射造成生精细胞损伤机制[13]。
ROS会导致精子中多种形式的DNA损伤,包括染色质交联、染色体缺失、DNA链断裂和碱基氧化[14]。同时,ROS通过诱导细胞色素C的释放和激活含半胱氨酸的天冬氨酸蛋白水解酶-9(cysteine aspartate specific protease-9, Caspases-9)和含半胱氨酸的天冬氨酸蛋白水解酶-3(cysteine aspartate specific protease-3, Caspases-3)而成为细胞凋亡的重要介质[15]。细胞内小鸟嘌呤核苷酸三磷酸水解酶(guanosine triphosphate hydrolase, GTPase)Ras相关的C3肉毒菌毒素底物1(RAS-related C3 botulinum toxin substrate 1, Rac 1)分子是还原型烟酰胺腺嘌呤二核苷酸磷酸(nicotinamide adenine dinucleotide phosphate, NADPH)氧化酶的亚基,参与到ROS的生成,近期有研究表明Rac 1在细胞内ROS和脂质过氧化的增加中发挥作用,从而导致低剂量辐射引起的睾丸损伤[16]。
铁死亡是一种近年来被识别的新型程序性细胞死亡方式,其主要特征包括细胞内铁离子的累积、脂质过氧化物水平的显著升高,以及抗氧化系统的失衡[17]。辐射诱导的ROS能够促进脂质过氧化过程,其中ROS剥夺细胞膜中富含的多不饱和脂肪酸,如花生四烯酸,导致这些脂肪酸失去电子,转变成不稳定的自由基。这些自由基与氧气反应,形成脂质过氧化氢自由基,并通过Fenton反应进一步破坏细胞膜,最终引发细胞死亡[18]。有研究表明,辐射能够诱导癌细胞进入铁死亡状态,并且显著增强脂酰辅酶A合成酶长链家族成员4(acyl-CoA synthetase-4, ACSL4)的表达。ACSL4作为一种关键的脂质代谢酶,在铁死亡过程中发挥着重要作用,其表达水平的上调会促进脂质过氧化,进而增加铁死亡的发生[19]。
有研究发现,辐射诱导的谷胱甘肽过氧化物酶4(glutathione peroxidase 4, GPX4)表达下降,它将脂质过氧化物还原为脂醇,有助于减少ROS引发的脂质过氧化,进而抑制铁死亡[20]。这些结果表明辐射可能引发精原细胞损伤,铁死亡途径可能参与其中,但目前数据有限,需进一步深入地研究。
细胞焦亡是一种由炎症小体的激活所驱动的程序性细胞坏死,炎症小体是一种胞质多蛋白复合物,其功能是促进白细胞介素(interleukin, IL)家族成员的成熟与释放,形成凋亡相关斑点样蛋白(apoptosis-associated speck-like protein, ASC)斑点,并激活含半胱氨酸的天冬氨酸蛋白水解酶(cysteine aspartate specific protease, Caspases)[21]。有研究表明,辐射能够触发体内多个组织细胞焦亡,如骨髓、小肠、大脑和脾脏等。抑制ROS的产生可以显著降低辐射诱导的人晶状体上皮细胞焦亡[22]。尽管当前针对辐射损伤对睾丸生殖细胞焦亡影响的研究尚不充分,但这一领域具有重要的研究价值,值得进一步深入探究。
2.细胞凋亡:LDIR对精子发生损伤的一个重要生理机制是细胞凋亡,细胞凋亡限制了生精上皮中的生殖细胞数量[23]。在辐射作用下,在生殖细胞中产生磷酸化组蛋白(phosphorylated histone H2AX, γ-H2AX),γ-H2AX在包括p53在内的DNA修复因子的招募中起着关键作用,而p53在DNA损伤诱导的细胞凋亡中起着核心作用。在受到辐照的精原细胞中,γ-H2AX与p53相互作用导致精原细胞凋亡[24]。He等[25]研究发现,电离辐射在体内和体外条件下使小鼠精原细胞凋亡增加,核糖体蛋白L11(ribosomal protein L11, RPL11)、鼠双微体2(mouse double minute 2, MDM2)和p53的表达升高,核糖体大亚基蛋白23a(ribosomal large subunit protein 23a, RPL23a)的表达降低。同时,敲低RPL23a削弱了RPL23a和RPL11之间的相互作用,导致p53的积累,推测辐射通过RPL23a-RPL11-MDM2-p53通路诱导精原细胞凋亡。
研究表明,即使在非常低的剂量(10 mGy)下,也会引起DNA损伤和生殖细胞凋亡,导致精子发生停止[26]。辐射诱导细胞凋亡的启动可以被内在和外在两种不同的途径激活,这两种途径都涉及细胞内或细胞外环境的干扰,如DNA双链断裂(double strand breaks, DSBs)、Caspases、B细胞淋巴瘤因子2(B-cell lymphoma 2, Bcl-2)家族、p53、p53依赖性Bcl2相关X蛋白(p53 dependent Bcl-2 associated X protein, Bax)、内质网应激、ROS超载及其调节因子等[27-28]。杨艳明等[29]研究发现,低剂量照射后睾丸细胞中Caspases-9 mRNA和蛋白质表达具有一定的时间和剂量-效应规律,提示Caspases-9参与到线粒体途径和内质网应激途径的调控。另一项研究通过辐射作用下睾丸组织中缺氧诱导因子-1α(hypoxia-inducible factor-1α, HIF-1α)信号通路及下游靶蛋白Bcl-2/腺病毒E1B 19kDa蛋白相互作用蛋白3(Bcl-2/adenovirus E1B 19kDa interacting protein 3, BNIP3)表达变化的分析,提示HIF-1α/BNIP3介导的自噬在辐射诱导的睾丸细胞凋亡中具有潜在作用[30]。
3.DNA损伤修复:LDIR可直接诱导DNA分子损伤,其中DNA双链断裂是最常见的形式,也是对基因组完整性的最大威胁。Yasuda等[31]发现,p53基因在睾丸中卵母样细胞自发消除过程中起关键作用,而P53在胞浆中的结合蛋白P53结合蛋白1(P53-binding protein 1, 53BP1),在精原干细胞DNA双链断裂的修复中起着重要的作用。Tamminga和Kovalchuk[32]研究发现,精子异常跟DNA甲基化有关系,而DNA甲基化水平受到CCCTC结合因子(CCCTC binding factor, CTCF)和印记位点调节物兄弟因子(brother of the regulator of imprinted sites, BORIS)两个蛋白控制。在小鼠暴露电离辐射后,BORIS的相关表达出现下降,表明BORIS与电离辐射引起的生殖细胞DNA损伤有关。Messiaen等[33]发现,与野生型小鼠相比,辐照后DNA修复和重组蛋白Rad54敲除小鼠的精子发生恢复较慢且不完全,说明在精子发生过程中,Rad54可能在维持发育中的生殖细胞的基因组完整性以及DNA损伤修复方面具有关键作用。
生精细胞由几个不同的亚群组成,如精原干细胞及其分化的子代细胞(如精原细胞、精母细胞和圆形精子细胞),它们对电离辐射的敏感性各不相同[34],损伤修复机制也有所不同[35]。DNA损伤错误修复会导致生殖细胞系的新生突变,产生包括癌变在内的许多生物学后果[36]。DSBs必须在短时间内正确修复,以保持雄性生殖细胞的基因组完整性。目前主要有四种途径可以修复DSBs:同源重组(homologous recombination, HR)、非同源末端连接(non-homologous end joining, NHEJ)、选择性末端连接(alternative end joining, aEJ)和单链退火修复(single-strand annealing, SSA)[37]。HR和SSA通路仅在细胞周期的S和G2期起作用[38],而NHEJ和aEJ通路在G1、S和G2期起作用,由于使用DNA序列作为模板,因此容易出错[39]。
4.其他相关机制:睾丸中精子发生的正常进行不仅和精原干细胞的各种状态紧密相关,还和其周围环境密切相关。通过测定血清中的紧密连接相关蛋白、重组尼曼-皮克病C型2蛋白(recombinant Niemann Pick disease type C2, NPC2)和抗精子抗体,表明暴露于低剂量率慢性辐射的雄性小鼠可能会出现血睾屏障损伤和免疫性不育[40]。LDIR可以在不造成器质性损伤的情况下引起睾酮明显的合成紊乱,同时伴有3β-羟基类固醇脱氢酶(3β-hydroxysteroid dehydrogenase, 3β-HSD)基因去甲基化修饰,这可能成为预防LDIR引起的男性生殖损害的潜在靶点[41]。
赵颖[42]研究发现,低剂量电离辐射照射后小鼠生精细胞中确实存在蛋白泛素化现象,小鼠Vasa同源基因(mouse Vasa homologue, MVH)表达蛋白在334和411位点上被泛素化,推测其泛素化修饰可能跟精子发生调控有关。方芳等[43]基于转录组和蛋白组关联研究技术筛选低剂量电离辐射效应相关候选基因及其对应的表达蛋白,其中与差异蛋白表达趋势相同的差异基因有7个(FBXO7、SNCA、ORM1、ORM2、HIST1H4J、HBZ和LYZ),表达趋势相反的基因有5个(SLC4A1、BCAM、C4B-2、KEL和TGM2),LDIR对生殖系统的影响可能与MVH表达蛋白泛素化、上述12个相关候选基因及其蛋白表达等密切相关,这为深入研究LDIR效应机制提供新线索。
二、电离辐射引起精子发生损伤的防护1.抗辐射药物:在过去几十年中,抗辐射药物的研究一直是医学和药理学领域的研究重点。尽管目前获得批准的辐射防护剂种类有限,尤其是缺乏针对生殖系统辐射损伤的有效防护药物,因此,开发安全、高效、不良反应小且经济的抗辐射药物显得尤为迫切。研究发现,多种药物对电离辐射引起的生殖损伤有一定疗效,包括天然产物、合成化合物、激素和生长因子类等,主要通过缓解氧化应激、抗凋亡、减轻炎症等机制发挥辐射损伤保护的作用[44]。
(1) 天然产物多酚类:多酚是广泛存在于植物中的次级代谢产物,是一类具有多个羟基的酚类化合物,根据其结构的多样性,多酚可分为许多亚类,包括但不限于黄酮类和非黄酮类,每种亚类都有不同的理化性质和生物活性[45]。
橘皮苷是一种二氢黄酮(醇)类化合物,存在于柑橘类水果、蔬菜和其他产品中。Shaban等[46]研究表明,橘皮苷治疗能使8 Gy γ射线照射后的SD(Sprague-Dawley)大鼠睾丸/体重相对比显著提升,DNA碎片化水平、黄嘌呤氧化酶活性、丙二醛(malondialdehyde, MDA)和氧化性谷胱甘肽含量显著下降,超氧化物歧化酶(superoxide dismutase, SOD)和过氧化氢酶(catalase, CAT)活性以及谷胱甘肽(glutathione, GSH)水平显著增加。证明橘皮苷可通过提高抗氧化防御系统能力抑制氧化应激和脂质过氧化,从而防护辐射诱导的生精损伤。
原花青素在植物中广泛存在,是由黄烷-3-醇单体缩合而成的聚多酚类物质,具有极强的抗氧化等活性,已广泛在食品、药品、化妆品等领域应用。Shen等[47]发现,原花青素治疗后使5 Gy γ射线照射后的小鼠睾丸基质细胞(TM3)脱氧核苷酸末端转移酶(terminal deoxynucleotidyl transferase, TdT)介导的dUTP缺口末端标记法(TdT-mediated dUTP nick end labeling, TUNEL)检测的阳性细胞明显降低,可显著抑制细胞内ROS升高,对睾丸中总GSH和SOD含量降低以及MDA含量升高程度有所缓解。同时,原花青素可以降低照射后睾丸中磷酸化p38丝裂原活化蛋白激酶(phosphorylated p38 mitogen-activated protein kinase, p-P38)和磷酸化c-Jun氨基末端激酶(phosphorylated c-Jun N-terminal Kinase, p-JNK)表达水平增加的程度。表明原花青素可以通过其抗氧化作用和抑制丝裂原活化蛋白激酶(mitogen-activated protein kinase, MAPK)信号通路,减少TM3细胞凋亡,对睾丸具有放射保护作用。
绿原酸是具有芳香环结构以及一个或多个羟基的水溶性多酚,在食物和草药广泛存在,具有抗氧化活性。Abedpour等[48]研究发现,绿原酸可以通过增强DNA损伤修复活性、抑制细胞凋亡和减轻IR诱导的氧化应激对睾丸发挥辐射保护和治疗作用,推测细胞凋亡相关的关键通路参与其中,但仍需更多细胞和分子水平上的研究来证实。
姜黄素是从姜黄根茎中提取的一种具有二酮结构的天然植物多酚,具有抗肿瘤、抗炎症、抗氧化等生物学作用。杨文军[49]研究表明,姜黄素预处理可以显著减少辐射引起的细胞活力下降和细胞凋亡,改善细胞的氧化应激状态以及线粒体膜电位。同时,小鼠睾丸组织和精母细胞内核因子E2相关因子2(nuclear factor erythroid 2-related factor 2, Nrf2)的蛋白水平显著增加,干扰Nrf2基因后,姜黄素对精母细胞的保护作用显著降低,推测姜黄素发挥保护作用的机制可能与其通过调控Nrf2/血红素氧合酶1(heme xygenase 1, HO-1)抗氧化信号通路维持机体氧化应激状态平衡有关。
水飞蓟素是从水飞蓟果实及种子中提取的多酚黄酮类化合物,具有抗氧化活性,能抑制氧化应激。Fatehi等[50]研究表明水飞蓟素可以保护小鼠精子免受2 Gy γ射线的影响,能使辐射诱导的精子数量、形态和活力的损害以及睾丸重量都有所恢复。
表没食子儿茶素-3-没食子酸酯(epigallocatechin gallate, EGCG)是一种从绿茶中提取的儿茶素类黄酮化合物。Ding等[51]研究发现EGCG可能通过MAPK/Bcl-2家族/Caspases-3途径,防止短期内生殖细胞凋亡并减弱辐射诱导的氧化应激,显著改善睾丸内生精小管损伤、生殖细胞脱落和精子尾端损伤。此外,长期应用EGCG可改善电离辐射诱导的血睾屏障损伤,抑制睾丸类固醇生成,从而刺激生精恢复。
阿魏酸属于一种植物酚酸类化合物,存在于小麦、米糠和西兰花等植物中。El-Mesallamy等[52]研究表明,阿魏酸可以提高受辐照睾丸沉默信息调节因子1(silent mating type information regulation 2 homolog-1, SIRT1)和睾酮水平,降低氧化应激、多聚ADP核糖聚合酶1(poly ADP-ribose polymerase 1, PARP1)和胞质钙,从而阻止由辐射诱导的精原细胞坏死,改善精子发生。
多糖类:多糖是由许多单糖分子通过糖苷键连接而成的含有20多个糖基的链。天然多糖根据来源可分为植物多糖、动物多糖和微生物多糖,是一类具有免疫调节、抗肿瘤和抗炎作用的生物分子[53]。
枸杞多糖是从枸杞果实中提取的一种水溶性多糖,具有多种生物活性。Luo等[54]证实,枸杞多糖可以修复辐射诱导的睾丸组织中生精细胞的直接损伤,通过清除自由基,抑制脂质过氧化与ROS的产生,促进下丘脑—垂体—肾上腺轴功能的功能恢复。
海带多糖是一种从海带中提取的多糖,具有很好的食用安全性。刘军等[55]研究发现,海带多糖可以改善慢性局部辐照大鼠的性激素分泌水平,提高精子数量及活力,对辐射造成大鼠精子发生的损伤有一定保护作用。
其他类天然产物:番茄红素是存在于番茄、西瓜、葡萄柚等水果中的一种类胡萝卜素,具有11个共轭双键及2个非共轭双键的非环状平面多不饱和脂肪烃,是一种强效的抗氧化剂。Qu等[56]研究发现,番茄红素可以通过抑制细胞凋亡和线粒体功能障碍来防止电离辐射诱导的睾丸损伤。
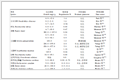
紫丁香苷是一种苯丙醇苷类化合物,主要来源于欧丁香和刺五加等植物,具有多种药理活性。胡昌坤等[57]研究发现,紫丁香苷能够改善低剂量辐射诱导的小鼠睾丸内细胞因子调节紊乱和氧化应激水平,有效降低小鼠生殖系统损伤(表 1)。
|
表 1 电离辐射对精子发生的损伤防护天然产物 Table 1 Natural products for the protection against ionizing radiation-induced damage to spermatogenesis |
(2) 合成化合物:氨磷汀(amifostine, WR-2721)是一种半胱胺的含硫醇分子衍生物,目前它是美国食品药品监督管理局(Food and Drug Administration, FDA)特别批准的唯一可作为辐射防护剂的细胞保护剂。给药后,氨磷汀能快速穿透正常组织,缓慢进入肿瘤细胞,从而优先保护正常组织。然而,由于氨磷汀的毒副作用,尚未得到广泛的临床应用[58]。有研究报道,在2 Gy睾丸照射前用氨磷汀预处理可检测其对生殖细胞具有抗凋亡作用[59]。然而,Andrieu等[60]研究证明,尽管氨磷汀对大鼠生殖细胞有辐射保护作用,但在暴露于高达6 Gy的辐射之前使用时,氨磷汀毒副作用比较明显,所以需要考量其安全性。
血管紧张素Ⅱ(angiotensin Ⅱ, AngⅡ)1型受体拮抗剂是临床上一类重要的药物,主要用于治疗高血压、心衰、糖尿病肾病等疾病。Dos等[61]研究表明,氯沙坦通过对AngⅡ 1型受体轴的抑制可有效保护2.5 Gy辐射诱导氧化应激所产生的组织损伤。另外,它使睾丸中AngⅡ通过AngⅡ 1型受体来调节间质细胞的类固醇生成,增加睾酮的生成,有利于精子发生的损伤恢复。
他汀类药物是一类广泛用于降低胆固醇和治疗心血管疾病的药物。Naeimi等[62]研究发现,他汀类药物可能对男性生殖系统具有辐射保护作用,其中阿托伐他汀已被证明通过减少细胞凋亡可以防止辐射引起的睾丸损伤。
二甲双胍是临床上常见的抗糖尿病药物,具有潜在的抗氧化、辐射防护和抗癌特性[63]。Men等[64]研究发现,二甲双胍可以改善辐射诱导的氧化损伤并减轻睾丸生殖细胞凋亡,从而缓解辐射导致的雄性生殖系统损伤,显示出其作为抗氧化剂的潜力。Tajabadi等[65]研究表明,二甲双胍和褪黑素联合保护生殖细胞免受辐射诱导的DNA损伤和细胞凋亡。
二甲基亚砜(dimethyl sulfoxide, DMSO)是一种含硫的自由基清除剂,在生物化学、药物、有机合成等领域应用广泛。彭仁军等[66]研究发现,DMSO可以降低辐照后生精细胞内的氧化应激水平,抑制生精细胞的凋亡,促进生精细胞增殖,同时还通过减轻细胞DNA损伤,促进辐照后精子发生的快速恢复。
西咪替丁和法莫替丁都属于组胺H2受体拮抗剂,研究发现,它们可以通过抗氧化应激和免疫调节来减少几种啮齿动物低剂量电离辐射诱导的组织损伤,包括睾丸组织[67-70]。
(3) 激素和生长因子类:褪黑素是一种具有抗氧化和清除自由基特性的松果体衍生激素,主要在调节昼夜节律及睡眠-觉醒方面发挥重要作用。Khan等[71]研究表明,褪黑素治疗通过抑制辐射诱导的依赖性p53凋亡蛋白—共济失调毛细血管扩张突变蛋白(ataxia-telangiectasia mutated proteins, ATM)、p53等的表达,增强生殖细胞抗氧化防御系统的能力,减少DSBs和精子异常,从而有利于生精功能的恢复。
成纤维细胞生长因子9(fibroblast growth factor 9, FGF9)是成纤维细胞生长因子家族中的一员,可以调节细胞增殖、分化和迁移等过程。Yang等[72]研究发现,FGF9通过p38 MAPK信号通路促进小鼠精原干细胞增殖,从而对辐射诱导的睾丸损伤有防护作用。
(4) 其他类:辅酶Q10天然存在于人体当中,具有多种生理功能。Said等[73]通过动物实验证实,辅酶Q10显著增加了精子数量和活力,同时减少了辐射后精子缺陷的发生。
α-硫辛酸是一种介导机体代谢反应的酶的必要辅因子,是重要的天然抗氧化剂。Said等[74]研究发现,α-硫辛酸通过抑制核因子κB(nuclear factor kappa-B, NFκB)信号通路及其下游促炎介质的表达来逆转辐射的损伤,从而减轻了辐照对睾丸引起的功能障碍,减少了睾丸的氧化损伤、炎症和纤维化。
热灭活的鼠伤寒沙门菌是一种病原体相关分子模式,可被多个Toll样受体(Toll-like receptors, TLRs)识别,TLR2和TLR4已被证明对辐照睾丸具有一定的保护作用,这种辐射保护作用与其减少睾丸组织细胞的凋亡和增加DNA损伤修复有关[75]。
氢气无色、无味,能轻松穿透细胞膜和生物屏障,作为一种有效的抗氧化剂,近年来在辐射防护方面受到广泛关注。马龙等[76]研究发现,氢气可以提高照射后小鼠精原细胞系(GC-1)细胞的活力,降低细胞系的凋亡率。此外,氢气也可以通过减少ROS生成来保护线粒体膜电位,抑制线粒体凋亡通路,从而对辐射具有防护作用。
2.过程防护:按照国际放射防护委员会(ICRP)倡议可合理达到的尽量低原则(ALARA),并指出实践正当性、防护最优化和剂量限值三大辐射防护原则,在实践过程当中,对于可以预见性的电离辐射接触,诸如日常体检、疾病诊治、肿瘤放疗及职业暴露等活动,必须严格做好过程防护,可有效降低辐射对生殖系统的损伤[77]。
(1) 外照射防护:外照射防护是指尽量减少或避免射线从外部对人体的照射,包括时间防护、距离防护和屏蔽防护,具体措施如减少机体辐照时间、尽量实施远距离作业、设置屏蔽体如铺盖铅皮、穿铅衣等。
(2) 内照射防护:内照射防护是指尽可能隔断放射性物质进入体内的途径,或使进入量减少到最低,包括隔离、净化、稀释等,具体如根据放射性核素的毒性、操作量或方式,对工作场所分级、分区管理,通过吸附、过滤、除尘、离子交换等方法或者采用干净的空气或水稀释放射性物质使其浓度降至可控制的限值水平以下等方式。
(3) 知识宣教:对从事辐射相关工作的人员,应加强对其健康教育培训,定期进行辐射剂量监测、职业健康体检,建立个人剂量档案,确保辐射剂量在安全范围内。同时,做好公众尤其是育龄男性辐射防护知识教育,提高辐射防护意识与能力。
三、总结与展望LDIR涉及生活各个方面,已有研究表明LDIR可以通过氧化应激、细胞凋亡、DNA损伤修复以及其他相关机制对精子发生造成损伤,但相关研究均不够深入,较少涉及相关信号通路的探讨,近年来各种组学技术的迅速发展为这一效应机制的深入挖掘提供了便捷的手段,运用多组学技术研究相关损伤机制将有可能找到LDIR生殖损伤的作用靶点,为其损伤防护与治疗提供理论依据。
在抗辐射药物方面,美国FDA目前虽已通过几种可以减少组织辐射损伤的药物,但是目前缺少针对生殖系统损伤防护的特效药物,文中罗列的抗辐射药物均以大剂量辐射损伤模型验证的结果,显示出了一定的防护效应,这些药物是否对低剂量辐射对生殖系统的损伤有防治效果,仍需进一步证实。
总之,尽管LDIR对精子发生的损伤机制和防护措施的研究已经取得了一定的进展,但仍有许多未知领域需要进一步探索。未来的研究目标应是不断克服现有研究的不足,进一步利用新技术加强LDIR对生殖系统的长期影响和远期效应的探讨,完善抗辐射药物的安全性、药效动力学以及药物递送系统的研究,尝试开展临床试验等,争取在LDIR对生殖系统损伤效应机制及防护药物研究方面取得突破性进展,更好地保护男性生殖健康,减少辐射对生育能力的潜在威胁。
利益冲突 无
作者贡献声明 朱燊负责文献收集、论文撰写与修改;胡波负责指导论文立题、修改;崔名慧协助文献收集与论文撰写;于豪冰、刘小宇、刘随意对文章知识性内容进行修改;何颖负责指导论文立题、修改
| [1] |
Kabilan U, Graber TE, Alain T, et al. Ionizing radiation and translation control: a link to radiation hormesis?[J]. Int J Mol Sci, 2020, 21(18): 6650. DOI:10.3390/ijms21186650 |
| [2] |
Kosik P, Skorvaga M, Belyaev I. Preleukemic fusion genes induced via ionizing radiation[J]. Int J Mol Sci, 2023, 24(7): 6580. DOI:10.3390/ijms24076580 |
| [3] |
Grant EJ, Brenner A, Sugiyama H, et al. Solid cancer incidence among the life span study of atomic bomb survivors: 1958-2009[J]. Radiat Res, 2017, 187(5): 513-537. DOI:10.1667/RR14492.1 |
| [4] |
Charles M. UNSCEAR report 2000:sources and effects of ionizing radiation. United Nations Scientific Comittee on the Effects of Atomic Radiation[J]. J Radiol Prot, 2001, 21(1): 83-86. DOI:10.1088/0952-4746/21/1/609 |
| [5] |
Wakeford R, Tawn EJ. The meaning of low dose and low dose-rate[J]. J Radiol Prot, 2010, 30(1): 1-3. DOI:10.1088/0952-4746/30/1/E02 |
| [6] |
Nagahori K, Qu N, Kuramasu M, et al. Changes in expression of specific mRNA transcripts after single-or re-irradiation in mouse testes[J]. Genes, 2022, 13(1): 151. DOI:10.3390/genes13010151 |
| [7] |
Han C. Gene expression programs in mammalian spermatogenesis[J]. Development, 2024, 151(8): dev202033. DOI:10.1242/dev.202033 |
| [8] |
Bohacek J, Mansuy IM. A guide to designing germline-dependent epigenetic inheritance experiments in mammals[J]. Nat Methods, 2017, 14(3): 243-249. DOI:10.1038/nmeth.4181 |
| [9] |
Kesari KK, Agarwal A, Henkel R. Radiations and male fertility[J]. Reprod Biol Endocrinol, 2018, 16(1): 118. DOI:10.1186/s12958-018-0431-1 |
| [10] |
Fukunaga H, Butterworth KT, Yokoya A, et al. Low-dose radiation-induced risk in spermatogenesis[J]. Int J Radiat Biol, 2017, 93(12): 1291-1298. DOI:10.1080/09553002.2017.1355579 |
| [11] |
Azzam EI, Jay-Gerin JP, Pain D. Ionizing radiation-induced metabolic oxidative stress and prolonged cell injury[J]. Cancer Lett, 2012, 327(1-2): 48-60. DOI:10.1016/j.canlet.2011.12.012 |
| [12] |
Dickinson BC, Chang CJ. Chemistry and biology of reactive oxygen species in signaling or stress responses[J]. Nat Chem Biol, 2011, 7(8): 504-511. DOI:10.1038/nchembio.607 |
| [13] |
Sabeti P, Pourmasumi S, Rahiminia T, et al. Etiologies of sperm oxidative stress[J]. Int J Reprod Biomed, 2016, 14(4): 231-240. |
| [14] |
Agarwal A, Said TM. Oxidative stress, DNA damage and apoptosis in male infertility: a clinical approach[J]. BJU Int, 2005, 95(4): 503-507. DOI:10.1111/j.1464-410X.2005.05328.x |
| [15] |
Said TM, Paasch U, Glander HJ, et al. Role of caspases in male infertility[J]. Hum Reprod Update, 2004, 10(1): 39-51. DOI:10.1093/humupd/dmh003 |
| [16] |
Manisaligil YA, Gumustekin M, Micili SC, et al. The role of small GTPase Rac1 in ionizing radiation-induced testicular damage[J]. Int J Radiat Biol, 2022, 98(1): 41-49. DOI:10.1080/09553002.2021.1988752 |
| [17] |
Yan B, Ai Y, Sun Q, et al. Membrane damage during ferroptosis is caused by oxidation of phospholipids catalyzed by the oxidoreductases POR and CYB5R1[J]. Mol Cell, 2021, 81(2): 355-369. DOI:10.1016/j.molcel.2020.11.024 |
| [18] |
Liang FG, Zandkarimi F, Lee J, et al. OPA1 promotes ferroptosis by augmenting mitochondrial ROS and suppressing an integrated stress response[J]. Mol Cell, 2024, 84(16): 3098-3114. DOI:10.1016/j.molcel.2024.07.020 |
| [19] |
Lei G, Zhang Y, Koppula P, et al. The role of ferroptosis in ionizing radiation-induced cell death and tumor suppression[J]. Cell Res, 2020, 30(2): 146-162. DOI:10.1038/s41422-019-0263-3 |
| [20] |
Xia C, Xing X, Zhang W, et al. Cysteine and homocysteine can be exploited by GPX4 in ferroptosis inhibition independent of GSH synthesis[J]. Redox Biol, 2024, 69: 102999. DOI:10.1016/j.redox.2023.102999 |
| [21] |
Zhang T, Ding S, Wang R. Research progress of mitochondrial mechanism in NLRP3 inflammasome activation and exercise regulation of NLRP3 inflammasome[J]. Int J Mol Sci, 2021, 22(19): 10866. DOI:10.3390/ijms221910866 |
| [22] |
Sun Y, Rong X, Li D, et al. Down-regulation of CRTAC1 attenuates UVB-induced pyroptosis in HLECs through inhibiting ROS production[J]. Biochem Biophys Res Commun, 2020, 532(1): 159-165. DOI:10.1016/j.bbrc.2020.07.028 |
| [23] |
Lee J, Richburg JH, Younkin SC, et al. The Fas system is a key regulator of germ cell apoptosis in the testis[J]. Endocr, 1997, 138(5): 2081-2088. DOI:10.1210/endo.138.5.5110 |
| [24] |
Hamer G, Roepers-Gajadien HL, van Duyn-Goedhart A, et al. DNA double-strand breaks and gamma-H2AX signaling in the testis[J]. Biol Reprod, 2003, 68(2): 628-634. DOI:10.1095/biolreprod.102.008672 |
| [25] |
He YX, Guo YX, Zhang Y, et al. Ionizing radiation-induced RPL23a reduction regulates apoptosis via RPL11-MDM2-p53 pathway in mouse spermatogonia[J]. Biomed Environ Sci, 2021, 34(10): 789-802. DOI:10.3967/bes2021.108 |
| [26] |
Grewenig A, Schuler N, Rübe CE. Persistent DNA damage in spermatogonial stem cells after fractionated low-dose irradiation of testicular tissue[J]. Int J Radiat Oncol Biol Phys, 2015, 92(5): 1123-1131. DOI:10.1016/j.ijrobp.2015.04.033 |
| [27] |
Chater S, Amara S, Moussata D, et al. Differential effects of ionizing radiation and platinum-derivative chemotherapy on apoptotic pathways in testicular germ cells[J]. Int J Radiat Biol, 2007, 83(4): 269-278. DOI:10.1080/09553000701227573 |
| [28] |
Jiao Y, Cao F, Liu H. Radiation-induced cell death and its mechanisms[J]. Health Phys, 2022, 123(5): 376-386. DOI:10.1097/HP.0000000000001601 |
| [29] |
杨艳明, 方芳, 刘念, 等. 低剂量电离辐射诱导小鼠睾丸细胞中Caspase-9表达的变化[J]. 中华放射医学与防护杂志, 2014, 34(3): 185-187. Yang YM, Fang F, Liu N, et al. Low-dose ionizing radiation induces changes in Caspase-9 expression in mouse testicular cells[J]. Chin J Radiol Med Prot, 2014, 34(3): 185-187. DOI:10.3760/cma.j.issn.0254-5098.2014.03.007 |
| [30] |
Xu R, Shen S, Wang D, et al. The role of HIF-1α-mediated autophagy in ionizing radiation-induced testicular injury[J]. J Mol Histol, 2023, 54(5): 439-451. DOI:10.1007/s10735-023-10153-6 |
| [31] |
Yasuda T, Oda S, Li Z, et al. Gamma-ray irradiation promotes premature meiosis of spontaneously differentiating testis-ova in the testis of p53-deficient medaka(Oryzias latipes)[J]. Cell Death Dis, 2012, 3(10): e395. DOI:10.1038/cddis.2012.133 |
| [32] |
Tamminga J, Kovalchuk O. Role of DNA damage and epigenetic DNA methylation changes in radiation-induced genomic instability and bystander effects in germline in vivo[J]. Curr Mol Pharmacol, 2011, 4(2): 115-125. DOI:10.2174/1874467211104020115 |
| [33] |
Messiaen S, Le Bras A, Duquenne C, et al. Rad54 is required for the normal development of male and female germ cells and contributes to the maintainance of their genome integrity after genotoxic stress[J]. Cell Death Dis, 2013, 4(8): e774. DOI:10.1038/cddis.2013.281 |
| [34] |
Rübe CE, Zhang S, Miebach N, et al. Protecting the heritable genome: DNA damage response mechanisms in spermatogonial stem cells[J]. DNA Repair(Amst), 2011, 10(2): 159-168. DOI:10.1016/j.dnarep.2010.10.007 |
| [35] |
González-Marín C, Gosálvez J, Roy R. Types, causes, detection and repair of DNA fragmentation in animal and human sperm cells[J]. Int J Mol Sci, 2012, 13(11): 14026-14052. DOI:10.3390/ijms131114026 |
| [36] |
Wang J, Fan HC, Behr B, et al. Genome-wide single-cell analysis of recombination activity and de novo mutation rates in human sperm[J]. Cell, 2012, 150(2): 402-412. DOI:10.1016/j.cell.2012.06.030 |
| [37] |
Talibova G, Bilmez Y, Ozturk S. DNA double-strand break repair in male germ cells during spermatogenesis and its association with male infertility development[J]. DNA Repair(Amst), 2022, 118: 103386. DOI:10.1016/j.dnarep.2022.103386 |
| [38] |
Khan FA, Ali SO. Physiological roles of DNA double-strand breaks[J]. J Nucl Acids, 2017, 6439169. DOI:10.1155/2017/6439169 |
| [39] |
Scully R, Panday A, Elango R, et al. DNA double-strand break repair-pathway choice in somatic mammalian cells[J]. Nat Rev Mol Cell Biol, 2019, 20(11): 698-714. DOI:10.1038/s41580-019-0152-0 |
| [40] |
Son Y, Heo K, Bae MJ, et al. Injury to the blood-testis barrier after low-dose-rate chronic radiation exposure in mice[J]. Radiat Prot Dosim, 2015, 167(1-3): 316-320. DOI:10.1093/rpd/ncv270 |
| [41] |
Huang CS, Qiu LZ, Yue L, et al. Low-dose radiation-induced demethylation of 3β-HSD participated in the regulation of testosterone content[J]. J Appl Toxicol, 2022, 42(3): 529-539. DOI:10.1002/jat.4237 |
| [42] |
赵颖. 低剂量电离辐射导致雄性小鼠生殖系统损伤的机制研究[D]. 苏州: 苏州大学, 2020. DOI: 10.27351/d.cnki.gszhu.2020.000704. Zhao Y. Study on the damage mechanism of low dose ionizing radiation on the reproductive system of male mice[D]. Suzhou: Soochow University, 2020. DOI: 10.27351/d.cnki.gszhu.2020.000704. |
| [43] |
方芳, 余小玲, 牛东升, 等. 基于转录组和蛋白组关联研究技术筛选的低剂量电离辐射效应相关候选基因[J]. 中华劳动卫生职业病杂志, 2021, 39(10): 738-743. Fang Y, Yu XL, Niu DS, et al. Creening of candidate genes related to low-dose ionizing radiation based on transcriptome-proteome correlation research techniques[J]. Chin J Ind Hyg Occup Dis, 2021, 39(10): 738-743. DOI:10.3760/cma.j.cn121094-20200518-00267 |
| [44] |
Liu L, Liang Z, Ma S, et al. Radioprotective countermeasures for radiation injury[J]. Mol Med Rep, 2023, 27(3): 66. DOI:10.3892/mmr.2023.12953 |
| [45] |
Fraga CG, Croft KD, Kennedy DO, et al. The effects of polyphenols and other bioactives on human health[J]. Food Funct, 2019, 10(2): 514-528. DOI:10.1039/c8fo01997e |
| [46] |
Shaban NZ, Ahmed ZA, El-Rashidy FH, et al. Protective role of hesperidin against γ-radiation-induced oxidative stress and apoptosis in rat testis[J]. J Biol Res, 2017, 24: 5. DOI:10.1186/s40709-017-0059-x |
| [47] |
Shen H, Han J, Liu C, et al. Grape seed proanthocyanidins exert a radioprotective effect on the testes and intestines through antioxidant effects and inhibition of MAPK signal pathways[J]. Front Med, 2021, 8: 836528. DOI:10.3389/fmed.2021.836528 |
| [48] |
Abedpour N, Zeinali A, Karimipour M, et al. Protective effects of chlorogenic acid against ionizing radiation-induced testicular toxicity[J]. Heliyon, 2022, 8(10): e10798. DOI:10.1016/j.heliyon.2022.e10798 |
| [49] |
杨文军. 姜黄素对电离辐射致雄性小鼠生殖系统损伤的保护作用及相关机制研究[D]. 上海: 中国人民解放军海军军医大学, 2018. Yang WJ. Protective effect of curcumin on reproductive system injury induced by ionizing radiation in male mice and its related mechanisms[D]. Shanghai: Naval Medical University, 2018. |
| [50] |
Fatehi D, Mohammadi M, Shekarchi B, et al. Radioprotective effects of Silymarin on the sperm parameters of NMRI mice irradiated with γ-rays[J]. J Photochem Photobiol B, 2018, 178: 489-495. DOI:10.1016/j.jphotobiol.2017.12.004 |
| [51] |
Ding J, Wang H, Wu ZB, et al. Protection of murine spermatogenesis against ionizing radiation-induced testicular injury by a green tea polyphenol[J]. Biol Reprod, 2015, 92(1): 6. DOI:10.1095/biolreprod.114.122333 |
| [52] |
El-Mesallamy HO, Gawish RA, Sallam AM, et al. Ferulic acid protects against radiation-induced testicular damage in male rats: impact on SIRT1 and PARP1[J]. Environ Sci Pollut Res Int, 2018, 25(7): 6218-6227. DOI:10.1007/s11356-017-0873-6 |
| [53] |
Huang G, Mei X, Hu J. The antioxidant activities of natural polysaccharides[J]. Curr Drug Targets, 2017, 18(11): 1296-1300. DOI:10.2174/1389450118666170123145357 |
| [54] |
Luo Q, Cui X, Yan J, et al. Antagonistic effects of lycium barbarum polysaccharides on the impaired reproductive system of male rats induced by local subchronic exposure to 60Co-γ irradiation[J]. Phytother Res, 2011, 25(5): 694-701. DOI:10.1002/ptr.3314 |
| [55] |
刘军, 罗琼, 杨明亮, 等. 海带多糖干预对慢性电离辐射损伤后雄性大鼠生殖功能的影响[J]. 食品科学, 2010, 31(7): 293-296. Liu J, Luo Q, Yang ML, et al. Effect of laminaria japonica polysaccharides on reproductive function of male rats with chronic ionizing radiation damage[J]. Food Sci, 2010, 31(7): 293-296. |
| [56] |
Qu M, He Q, Guo B. Lycopene protects against ionizing radiation-induced testicular damage by inhibition of apoptosis and mitochondrial dysfunction[J]. Food Sci Nutr, 2024, 12(1): 534-546. DOI:10.1002/fsn3.3794 |
| [57] |
胡昌坤, 张雪梅, 肖成荣, 等. 紫丁香苷对低剂量辐射小鼠生殖系统损伤的防护作用初探[J]. 中国药物警戒, 2023, 20(3): 277-281. Hu CK, Zhang XM, Xiao CR, et al. Protective effects of syringin against reproductive system injury induced by low dose radiation in mice[J]. Chin J Pharm, 2023, 20(3): 277-281. DOI:10.19803/j.1672-8629.20220079 |
| [58] |
King M, Joseph S, Albert A, et al. Use of amifostine for cytoprotection during radiation therapy: a review[J]. Oncol, 2020, 98(2): 61-80. DOI:10.1159/000502979 |
| [59] |
Gezer A, Karadag-Sari E. The role of amifostine in preventing radiotherapy induced testicular tissue damage in rats[J]. Biotech Histochem, 2022, 97(3): 215-221. DOI:10.1080/10520295.2021.1933178 |
| [60] |
Andrieu MN, Kurtman C, Hicsonmez A, et al. In vivo study to evaluate the protective effects of amifostine on radiation-induced damage of testis tissue[J]. Oncol, 2005, 69(1): 44-51. DOI:10.1159/000087475 |
| [61] |
Dos SL, Alves MG, Chies AB, et al. Losartan attenuates radiation-induced damage on testes and accelerates tubular regeneration[J]. Front Reprod Health, 2022, 4: 904804. DOI:10.3389/frph.2022.904804 |
| [62] |
Naeimi RA, Talebpour AF, Khalatbary AR, et al. Atorvastatin mitigates testicular injuries induced by ionizing radiation in mice[J]. Reprod Toxicol, 2017, 72: 115-121. DOI:10.1016/j.reprotox.2017.06.052 |
| [63] |
Adalsteinsson JA, Muzumdar S, Waldman R, et al. Metformin is associated with decreased risk of basal cell carcinoma: A whole-population case-control study from Iceland[J]. J Am Acad Dermatol, 2021, 85(1): 56-61. DOI:10.1016/j.jaad.2021.02.042 |
| [64] |
Men J, Zhang L, Peng R, et al. Metformin ameliorates 2.856 GHz microwave-radiation-induced reproductive impairments in male rats via inhibition of oxidative stress and apoptosis[J]. Int J Mol Sci, 2023, 24(15): 12250. DOI:10.3390/ijms241512250 |
| [65] |
Tajabadi E, Javadi A, Azar NA, et al. Radioprotective effect of a combination of melatonin and metformin on mice spermatogenesis: A histological study[J]. Int J Reprod Biomed, 2020, 18(12): 1073-1080. DOI:10.18502/ijrm.v18i12.8029 |
| [66] |
彭仁军, 黄泽泽, 东肃河, 等. DMSO在制备减轻电离辐射引发的雄性生殖系统损伤的药物中的应用[P]. 202111251995. Peng RJ, Huang ZZ, Dong SH, et al. The application of dimethyl sulfoxide(DMSO)in the preparation of medications to alleviate ionizing radiation-induced male reproductive system Injury[P]. 202111251995. |
| [67] |
Jiang DW, Wang QR, Shen XR, et al. Radioprotective effects of cimetidine on rats irradiated by long-term, low-dose-rate neutrons and 60Co γ-rays[J]. Mil Med Res, 2017, 4: 7. DOI:10.1186/s40779-017-0116-7 |
| [68] |
Naeeji A, Mozdarani H, Shabestani MA, et al. Oral administration of vitamin C, cimetidine and famotidine on micronuclei induced by low dose radiation in mouse bone marrow cells[J]. J Biomed Phys Eng, 2017, 7(2): 117-126. DOI:10.1186/s40779-017-0116-7 |
| [69] |
张俊玲. 西咪替丁对低剂量电离辐射损伤的保护作用[D]. 上海: 上海海洋大学, 2016. Zhang JL. Radioprotective effects of cimitidine on low-dose irradiation[D]. Shanghai: Shanghai Ocean University, 2016. |
| [70] |
赵忆宁, 何颖, 沈先荣, 等. 西咪替丁对低剂量电离辐射致大鼠氧化应激的保护作用[J]. 解放军医学杂志, 2017, 42(2): 128-133. Zhao YN, He Y, Shen XR, et al. Protective effects of cimetidine against oxidative stress induced by low-dose irradiation[J]. Med J Chin People's Liberat Army, 2017, 42(2): 128-133. DOI:10.11855/j.issn.0577-7402.2017.02.07 |
| [71] |
Khan S, Adhikari JS, Rizvi MA, et al. Radioprotective potential of melatonin against 60Co γ-ray-induced testicular injury in male C57BL/6 mice[J]. J Biomed Sci, 2015, 22(1): 61. DOI:10.1186/s12929-015-0156-9 |
| [72] |
Yang F, Whelan EC, Guan X, et al. FGF9 promotes mouse spermatogonial stem cell proliferation mediated by p38 MAPK signalling[J]. Cell Prolif, 2021, 54(1): e12933. DOI:10.1111/cpr.12933 |
| [73] |
Said RS, Mohamed HA, Kamal MM. Coenzyme Q10 mitigates ionizing radiation-induced testicular damage in rats through inhibition of oxidative stress and mitochondria-mediated apoptotic cell death[J]. Toxicol Appl Pharmacol, 2019, 383: 114780. DOI:10.1016/j.taap.2019.114780 |
| [74] |
Said RS, Mohamed HA, Kassem DH. Alpha-lipoic acid effectively attenuates ionizing radiation-mediated testicular dysfunction in rats: crosstalk of NF-κB, TGF-β, and PPAR-γ pathways[J]. Toxicology, 2020, 442: 152536. DOI:10.1016/j.tox.2020.152536 |
| [75] |
Liao Z, Liu Z, Gong Z, et al. Heat-killed salmonella typhimurium protects mice against carbon ion radiation[J]. J Int Med Res, 2020, 48(10): 1220723808. DOI:10.1177/0300060520924256 |
| [76] |
马龙, 蔡山林, 郝伟, 等. 氢气通过减少活性氧生成抑制线粒体凋亡发挥对小鼠精原细胞的电离辐射防护作用[J]. 第二军医大学学报, 2021, 42(10): 1085-1090. Ma L, Cai SL, Hao W, et al. Hydrogen protecting spermatogonia from ionizing radiation by reducing reactive oxygen species production and inhibiting mitochondrial apoptosis[J]. Academ J Sec Mil Med Univ, 2021, 42(10): 1085-1090. DOI:10.16781/j.0258-879x.2021.10.1085 |
| [77] |
张香香, 杨勇. 电离辐射导致男性生育素质低下的机制及其防护措施[J]. 新医学, 2023, 54(6): 379-383. Zhang XX, Yang Y. Mechanism and protective measures of low fertility quality in men caused by ionizing radiation[J]. New Med, 2023, 54(6): 379-383. DOI:10.3969/j.issn.0253-9802.2023.06.001 |